补体C2是补体途径的C3和C5转换酶复合物催化组分的先驱体,是经典、凝集素和GZMK补体系统的一部分。它可分裂成补体C2a和丝氨酸蛋白酶补体C2b。C2 在免疫防御、免疫复合物清除及自身免疫性疾病发生中发挥作用。
C2的表达分布
C2的表达具有组织特异性,主要在肝脏和胆囊组织中表达。细胞水平上主要表达在单核吞噬细胞、肺泡细胞、肾小管细胞、神经元细胞、导管细胞、纤毛细胞中。

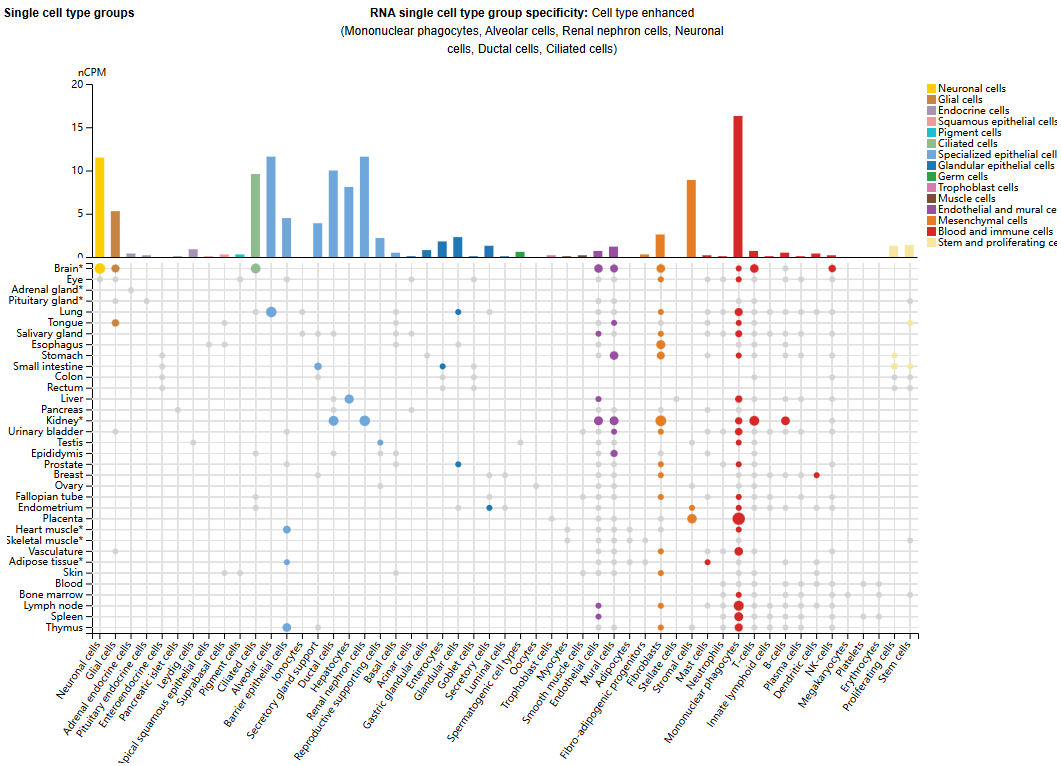
(数据来源 uniprot)
C2的结构和在补体系统中的作用
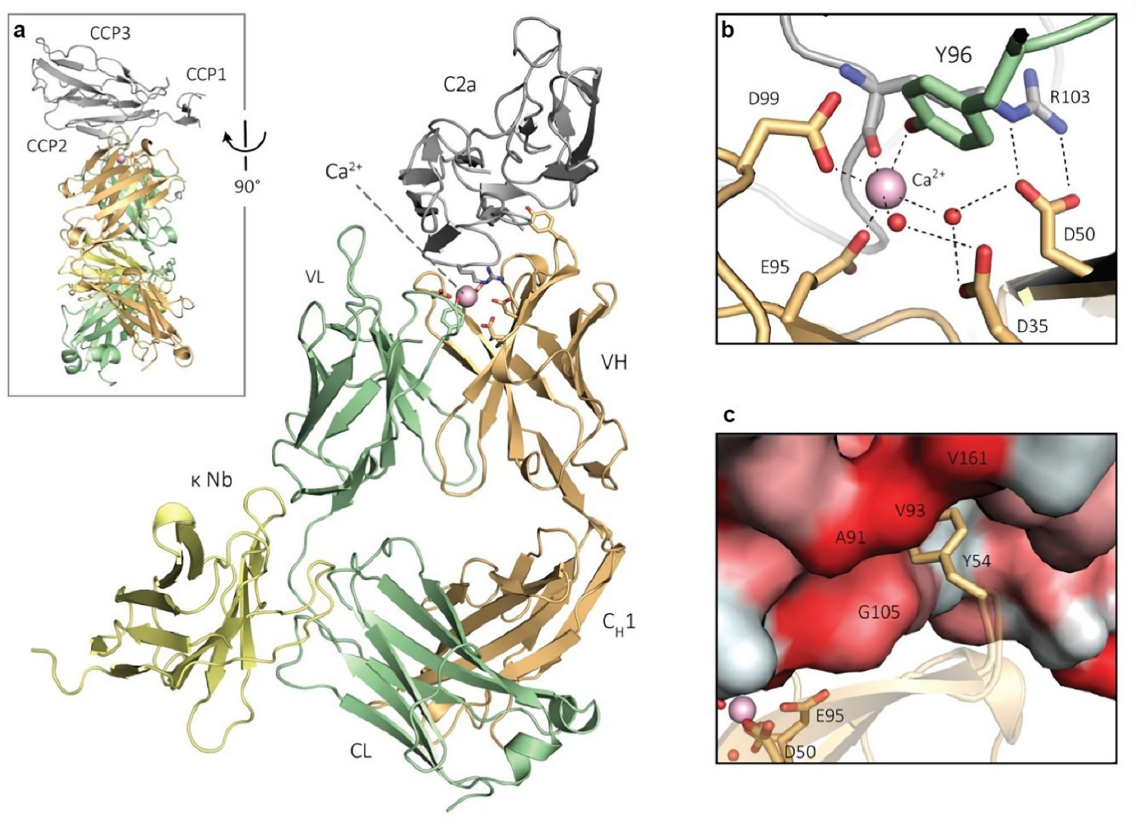
C2由732个氨基酸组成,是蛋白含有多个功能结构域,包括N端Sushi/CCP结构域和C端丝氨酸蛋白酶结构域。补体C2可被蛋白酶切割为C2b和C2a两个功能片段。
C2b结构域:由3个串联的CCP(补体调控蛋白)结构域组成,作为C2的锚定结合区。可特异性识别并结合C4b,将C2锚定至病原体/损伤细胞膜表面,参与前转化酶复合物组装;CCP的空间排布决定C2与C4b相互作用的特异性和结合稳定性。
C2a结构域:为催化核心区域,包含经典丝氨酸蛋白酶结构域。C2经蛋白酶切割、锚定在膜上后,C2a发生构象重排,激活蛋白酶活性;与C4b组装形成C3转化酶C4b2a,还可进一步形成 C5转化酶,驱动下游补体级联活化。
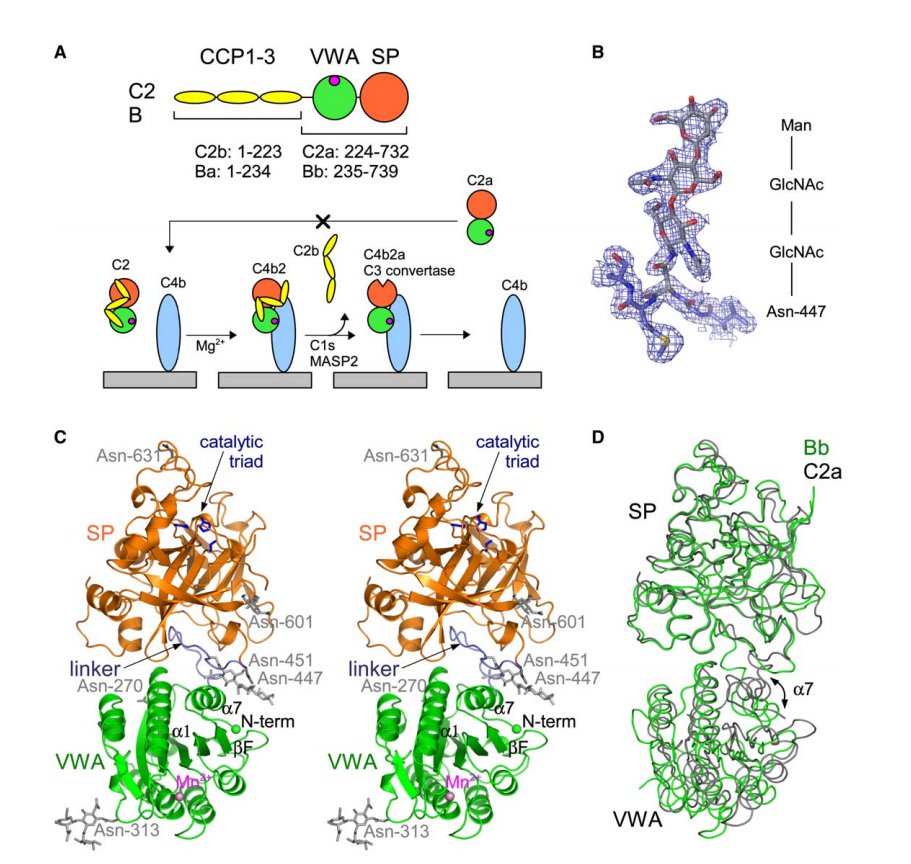
(数据来源 Milder FJ, et al. Structure. 2006)
C2是补体经典途径与凝集素途径关键丝氨酸蛋白酶前体,由C1s或MASP切割活化。活化后裂解为C2a与C2b片段,其中C2a保留酶活性,C2b游离释放。C2a与C4b在靶细胞膜表面组装形成C3转化酶C4b2a复合物。C4b2a可高效切割C3生成C3a、C3b,启动下游补体级联放大反应。C3转化酶进一步生成C5转化酶,推动膜攻击复合物MAC组装,介导靶细胞裂解。C2功能异常会造成补体通路失衡,是自身免疫、补体相关疾病的重要靶点。
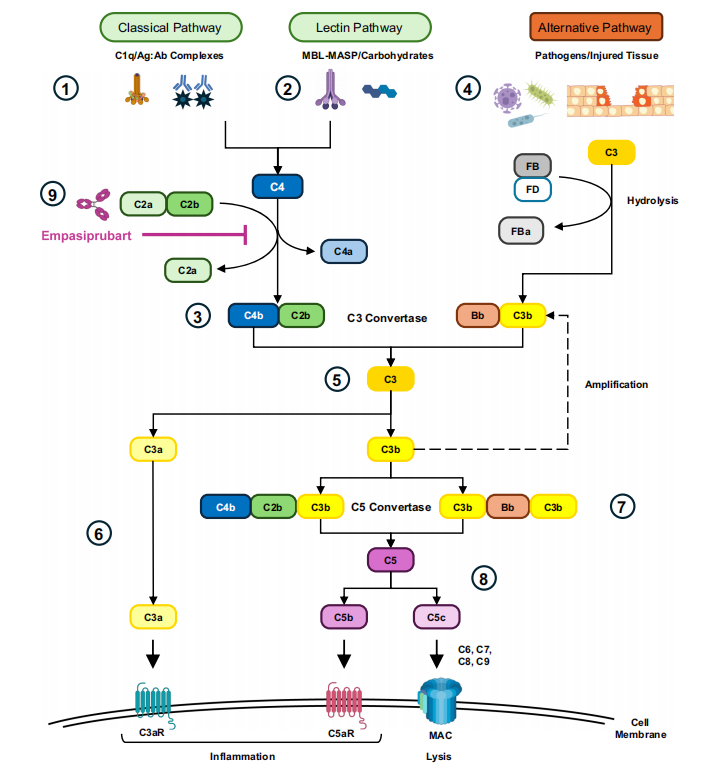
(数据来源 Van de Walle I, et al. Nat Commun. 2025)
C2的靶向治疗
Empasiprubart是一种新型人源化IgG1单克隆抗体(mAb),可与C2结合,从而阻断经典和凝集素补体途径的下游激活,同时保留替代途径。Empasiprubart以pH和钙依赖性方式与C2结合,Empasiprubart在Fc区(H433K和N434F)包含突变,用于增加与FcRn的亲和力,从而延长半衰期。报告了一项随机、双盲、安慰剂对照试验,以评估Empasiprubart在78名健康受试者中的安全性与耐受性,以及药代动力学、药效学和免疫原性(NCT04532125)。单次静脉(IV)给药的恩帕西普鲁巴特可使循环C2水平降低高达99%,并剂量依赖性地抑制经典途径和凝集素途径。多次静脉Empasiprubart给药可进一步强化游离C2水平的降低,这种降低持续至41周的终点。这种持续的降低与Empasiprubart的消除半衰期(70-88天)相一致。Empasiprubart的单次和多次递增剂量总体上安全且耐受良好。
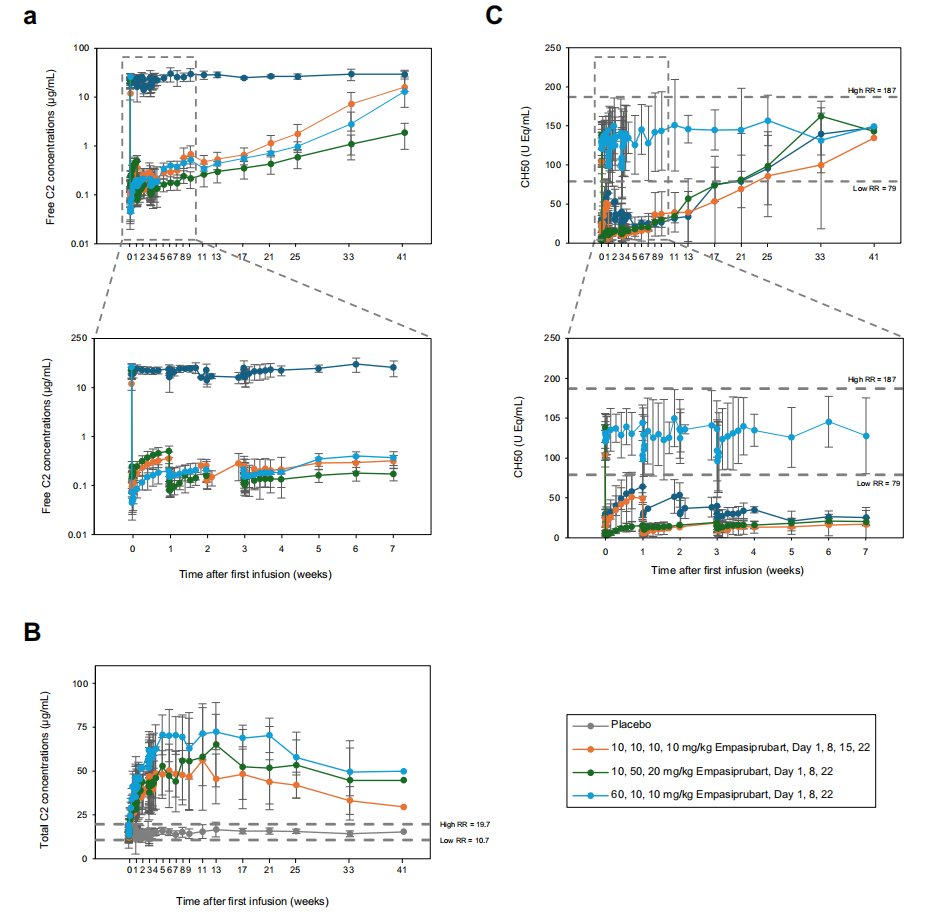
(数据来源 Van de Walle I, et al. Nat Commun. 2025)
我们收集整理一批C2相关抗体序列信息。文档可关注公众号“迈思生物”,号内回复“C2”下载。